信州大学の東城です。
私が本研究会の第2フェーズ途中から参画させていただいたのが2016年ですので、ちょうど10年が経過しました。
専門は水生昆虫であり、この10年間、柿田川という特徴的な河川が狩野川水系の中でどのように位置づけられるのかを課題として取り組んでまいりました。
水系内における水生昆虫類の個体レベルでの移動分散を直接追跡することは困難であるため、遺伝子マーカーを用いて遺伝子流動(遺伝子流動の方向性や強度)を評価することで、その動態を推定することを目指してきました。
この10年は解析技術が飛躍的に進展した期間でもあり、ゲノムワイドな遺伝子解析や環境DNA技術などに代表されるように、多様な手法が確立され、多角的なアプローチが可能となってきました。
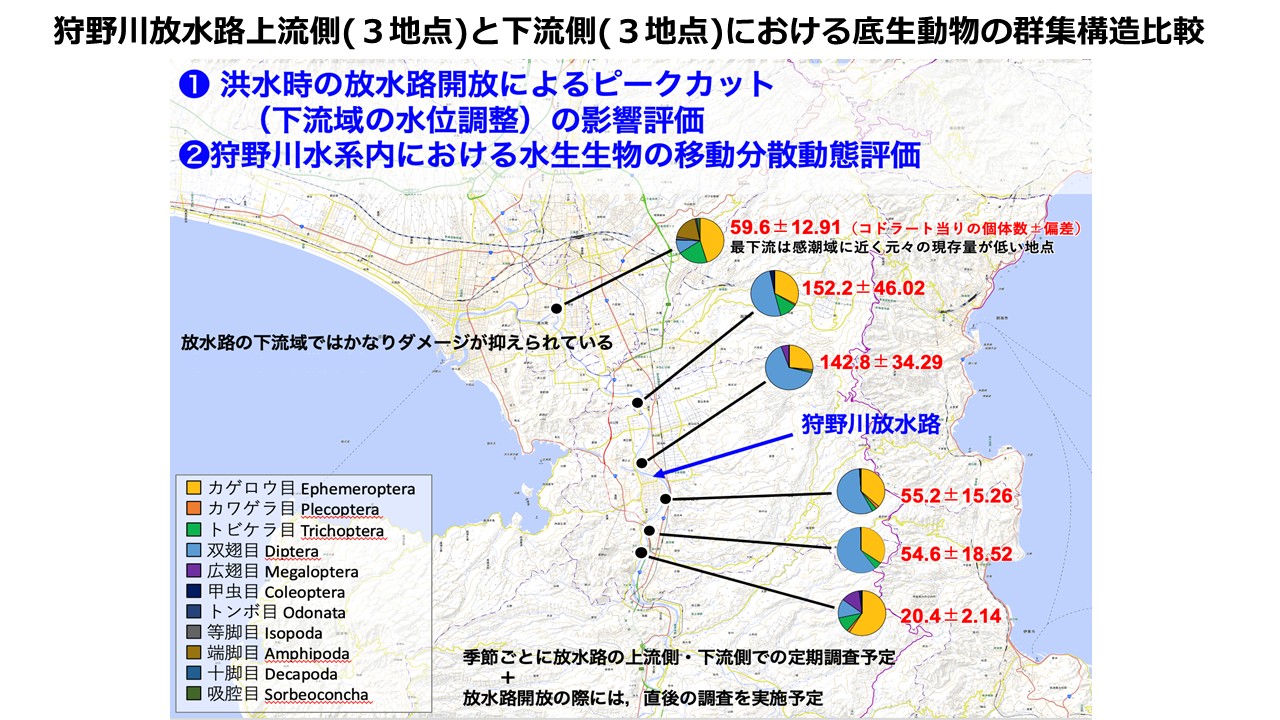
初期の頃の関わりでは、河川生態の課題として、狩野川放水路による狩野川本流における流量調整(ピークカット)の影響を評価するテーマに取り組みました。洪水時には流量の半分くらいが放水路に流れるので、分派点下流では狩野川の流量が低減されます。それにより水生昆虫の群集構造やバイオマスがどのように変化するかを評価しました。
群集構造の評価においては、海水の影響もある最下流域は大きく異なる傾向がみられましたが、それ以外はあまり違いがありませんでした。バイオマスは放水路の下流側の方が高い傾向が見られましたが、これは洪水の影響を受けにくいためと考えていました。
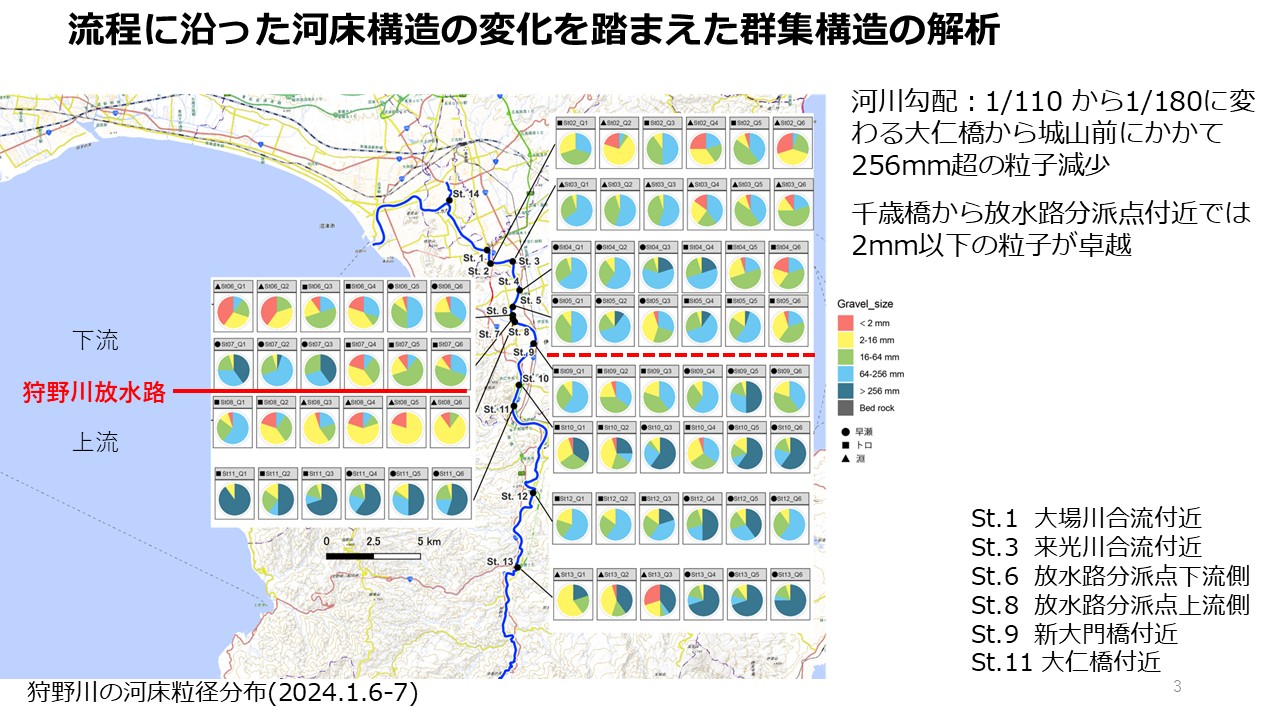
ただし、この研究会で議論する中で、知花先生からの助言もあり、従来のコドラートによる定量調査では、河川水辺の国勢調査の手法に倣い、礫のある瀬ハビタットでのサンプリングを実施してきましたが、下流域では石礫自体がとても限定的な所在となり、そうした環境に水生昆虫類が集中して生息することから、サンプリング地点選択の問題により正しい評価ができていない可能性がありました。下流域の石礫よりも砂が優占するような河床では、そのエリアを代表するような砂質の河床でサンプリングするべきでした。以降は、こうしたことにも留意しながら調査を実施してきました。
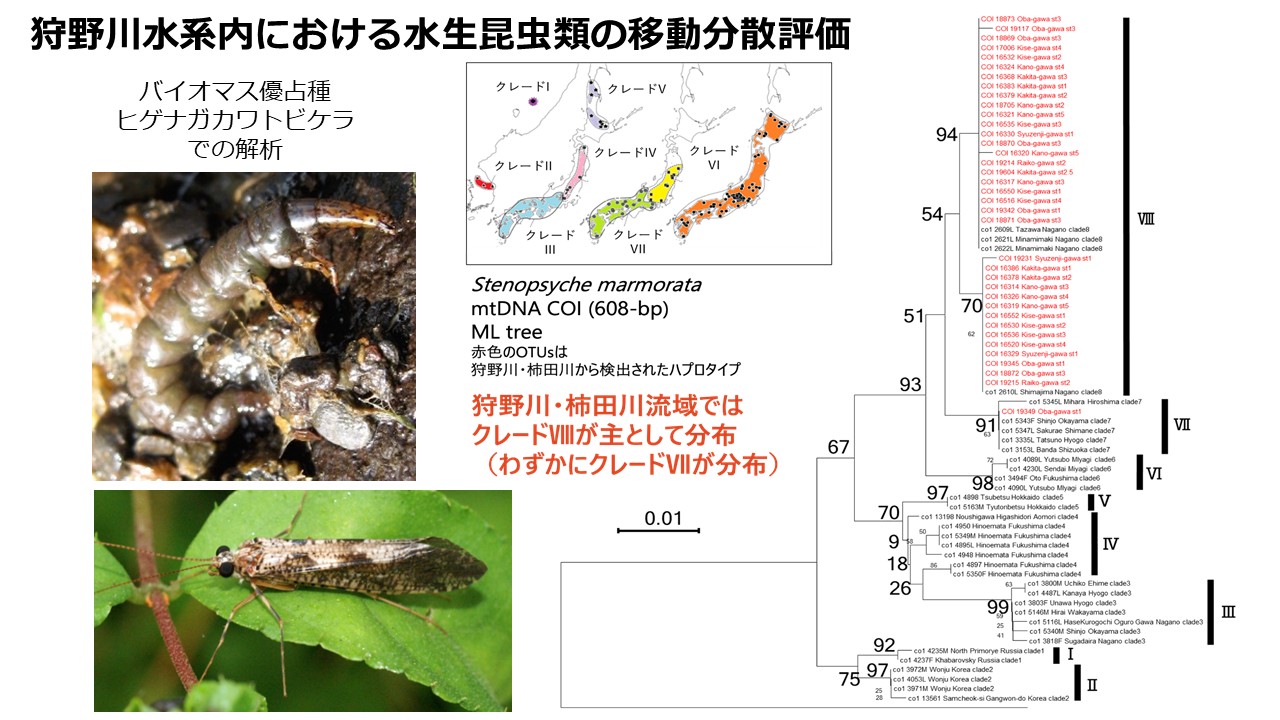
次に、遺伝子マーカーを用いて水生昆虫の移動を調べることで狩野川水系内における柿田川の位置づけを明らかにする研究について述べます。
ターゲットの一つとして、狩野川水系でも重要種の一つと考えられるヒゲナガカワトビケラを対象の一つとして注目しました。目的としては、狩野川水系内における本種の遺伝構造を評価すれば良いのですが、水系内において特異な遺伝子型が検出された際の評価をきちんとする上では、種全体としての遺伝構造を把握しておくことは重要です。そこで、日本全国規模、さらには大陸のヒゲナガカワトビケラも含めた、分布域を網羅するような地域集団を含めた種全体としての遺伝構造の特性を把握し、その上で、狩野川水系のデータを解釈することに留意しました。
ヒゲナガカワトビケラには2つの大陸系統を含め8つの遺伝系統が存在し、狩野川水系では主に系統Ⅷが、わずかに系統Ⅶが検出されます。系統Ⅷは日本全国に分布する系統で、系統Ⅶとは遺伝的に大きく異なります。このため、わずかに(偶然性が高く)検出されたり・されなかったりするような系統Ⅶを省いて、系統Ⅷだけで議論することにしました。
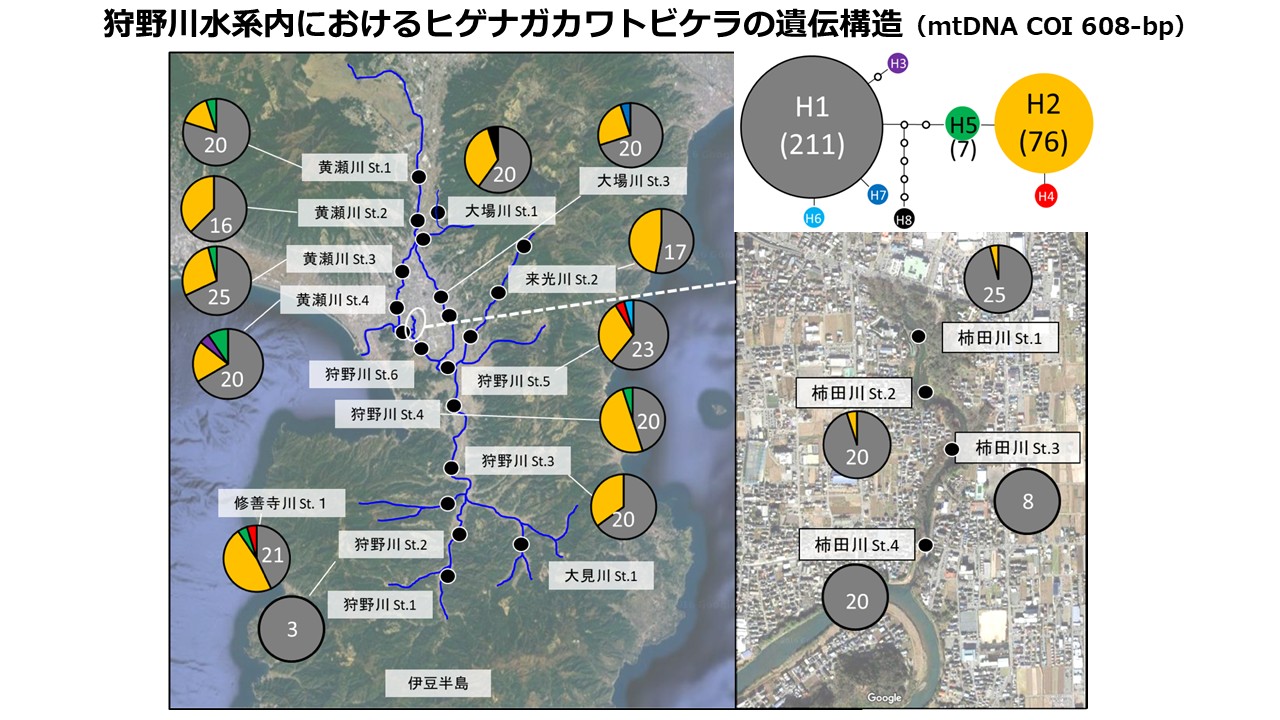
狩野川水系の中での遺伝構造を見ると、ミトコンドリアのCOⅠ遺伝子だと、10に満たないぐらいの遺伝子型しか出てこず、遺伝的多様性が低いという結果となりました。
ステーション1が上流側の第1展望台、ステーション2が第2展望台、ステーション3が清水小学校、ステーション4が、柿田橋になりますが、柿田川は、ほとんどH1の遺伝子型しか出てきませんでした。
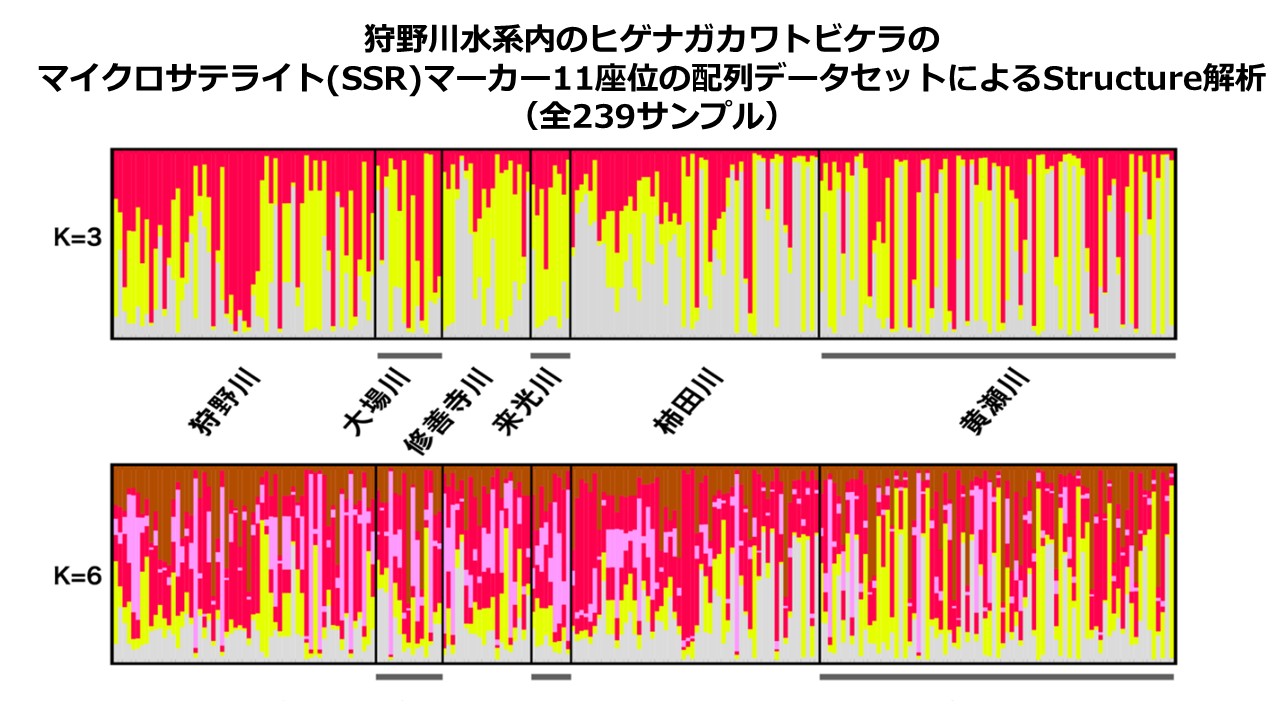
しかし感度が不足しているという疑念があったので、約2年がかりで鋭敏な遺伝マーカー開発に取り組みました。その結果、11の遺伝子座が解析できるマイクロサテライト・マーカーをつくることができました。ほかの生き物では、同程度の遺伝マーカーがあれば、同一種内、あるいは地理的に近接する地域集団などを対象とした地理的ファインスケール(地理的に狭いエリア中)での遺伝子流動等の評価がされていますので、このマーカーを用いて、かなりのサンプル数を解析してみました。
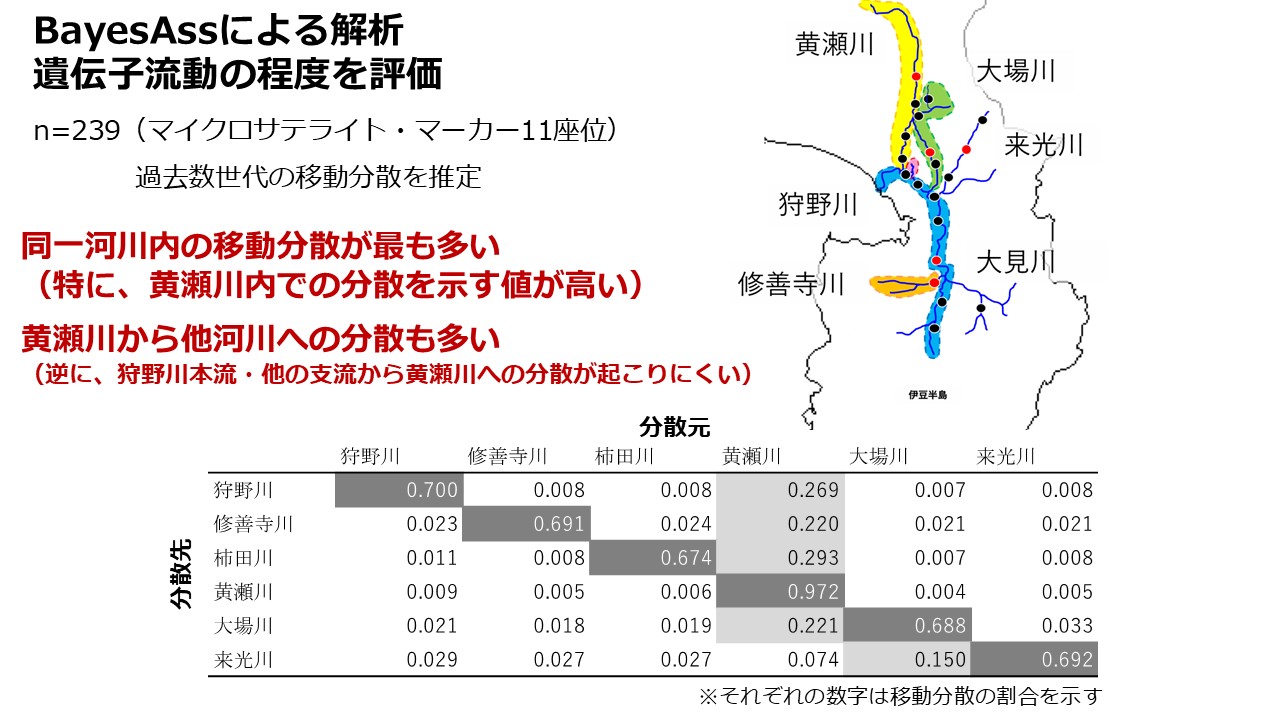
解析結果は、狩野川水系の中ではあまり違いが現れず、柿田川だけが特殊ということではないという結果が示されました。移動分散における、分散元と分散先の関係性を見ると、柿田川では、分散元も分散先も柿田川が約7割、黄瀬川から柿田川が約3割という評価となりました。
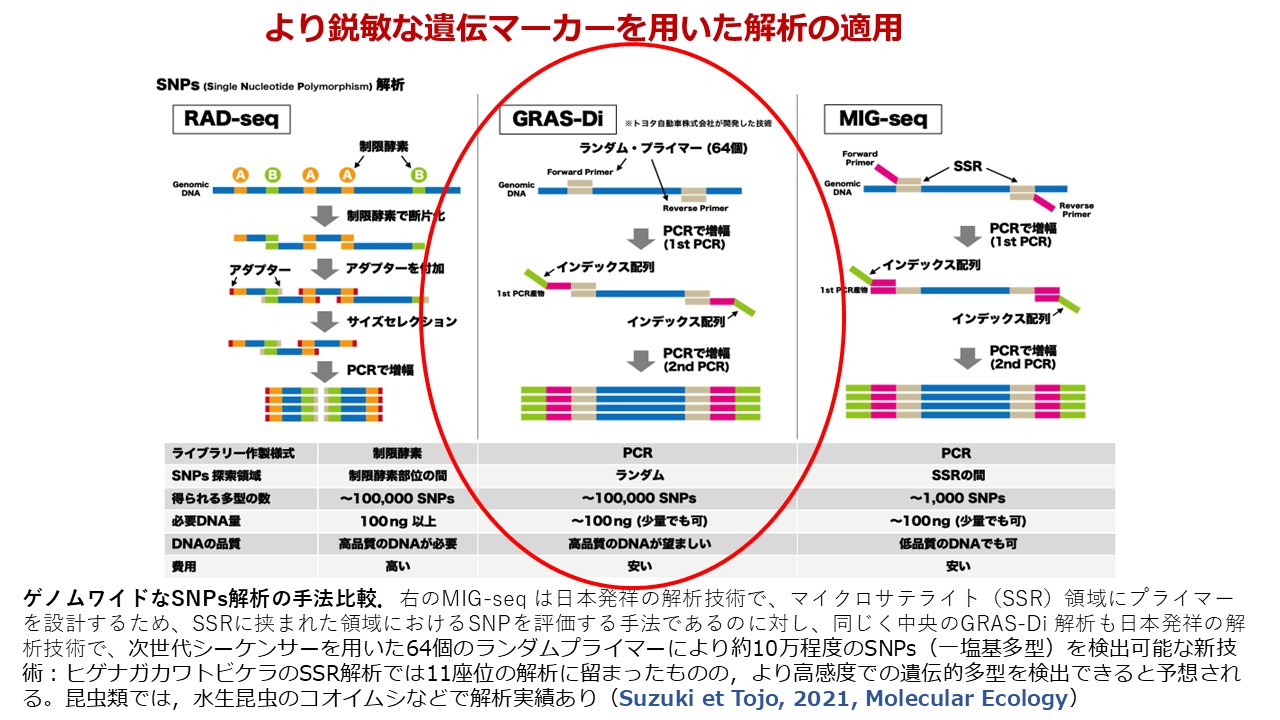
しかしながら、この遺伝マーカーで、本種の水系内の移動分散を正しく評価できているのかという疑問が依然として残り、新しい手法を探ってきました。
SNP解析と呼ばれますが、ゲノムワイドな遺伝子を対象に、膨大な数の配列内に存在する塩基置換(変位)を評価するという手法があります。RAD-seq法は世界的によく使われてきた手法で、たくさんの多型(SNP)を検出することができますが、コストが高く、質のいい遺伝子が必要になるという課題があります。
これに対して、同じゲノムワイドなSNP解析であるMIG-seq法は、東北大の陶山さんらが開発した技術で、マイクロサテライトに挟まれた配列内での塩基置換(遺伝的多型)を対象とする手法です。低コストですが、得られるSNPは少なくなる傾向があります。もう一つ、日本で開発されたゲノムワイドなSNP解析手法にGRAS-Di解析があります。これはトヨタ自動車が開発した技術です。低コストで多くのSNPが検出される傾向が知られています。
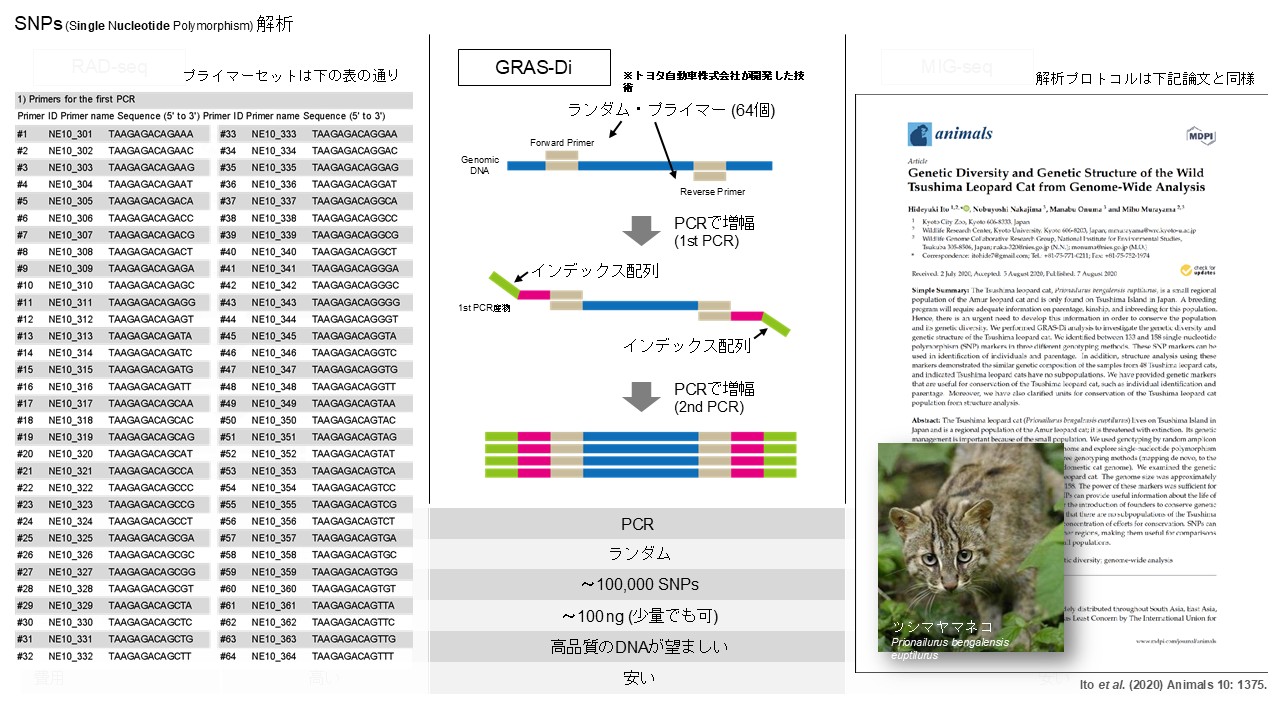
今回用いた手法は、このGRAS-Di法ですが、ゲノムワイドなSNPを検出するために、六十数個のランダムプライマーを用いることで対象の塩基配列を選定し、それらのプライマーに挟まれた遺伝子領域の中での遺伝的多型を評価するという手法です。
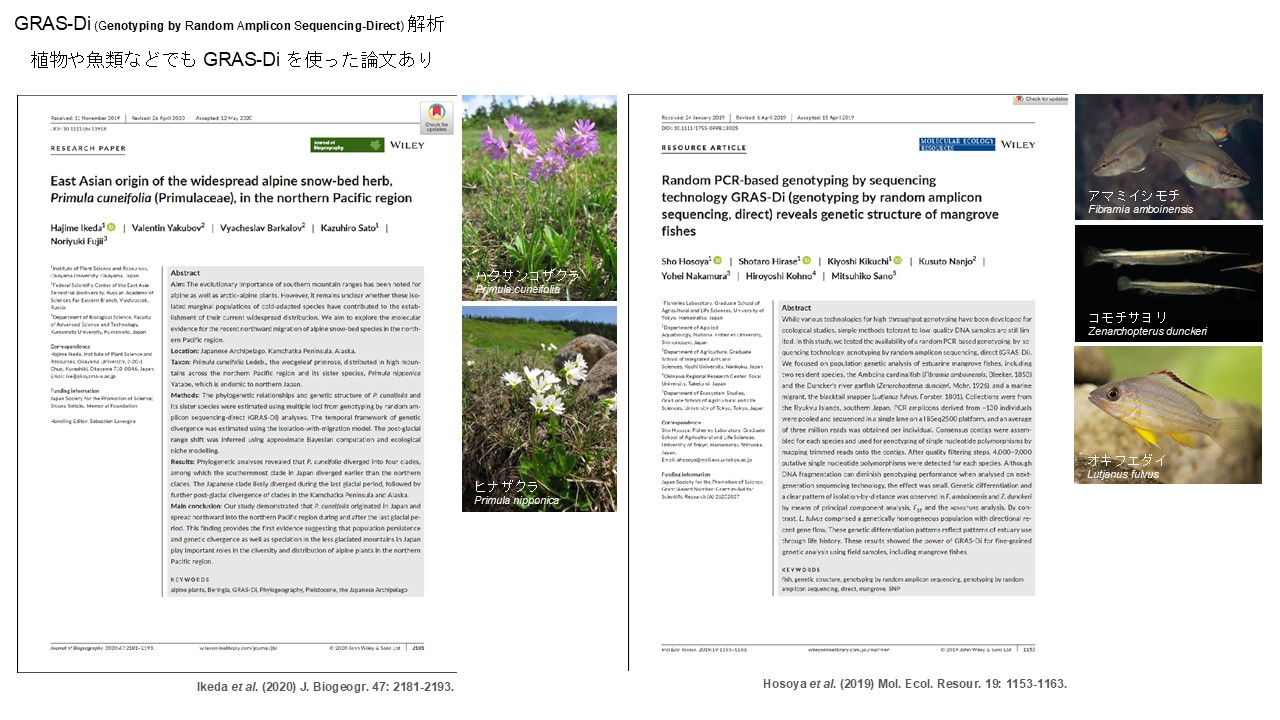
2019~2020年にはツシマヤマネコ、西表島のマングローブの魚類群集、高山植物などでもこの技術によって遺伝的多型の評価ができたという論文が出されています。
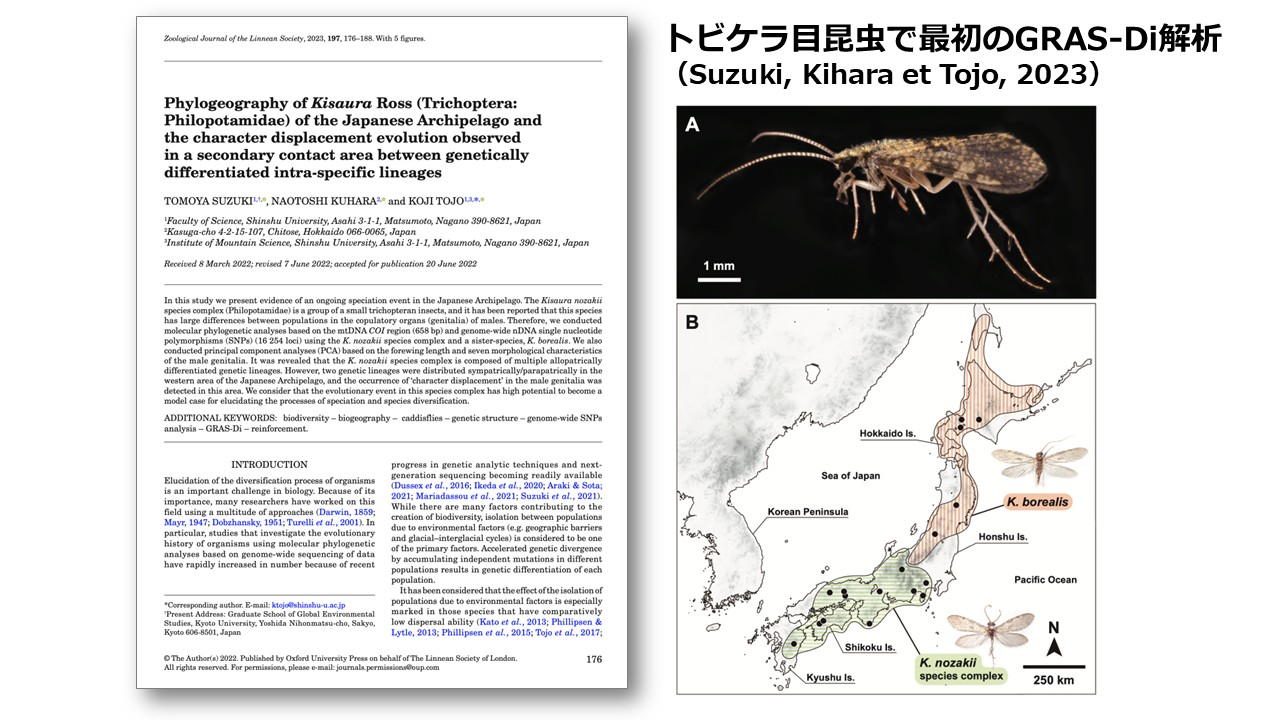
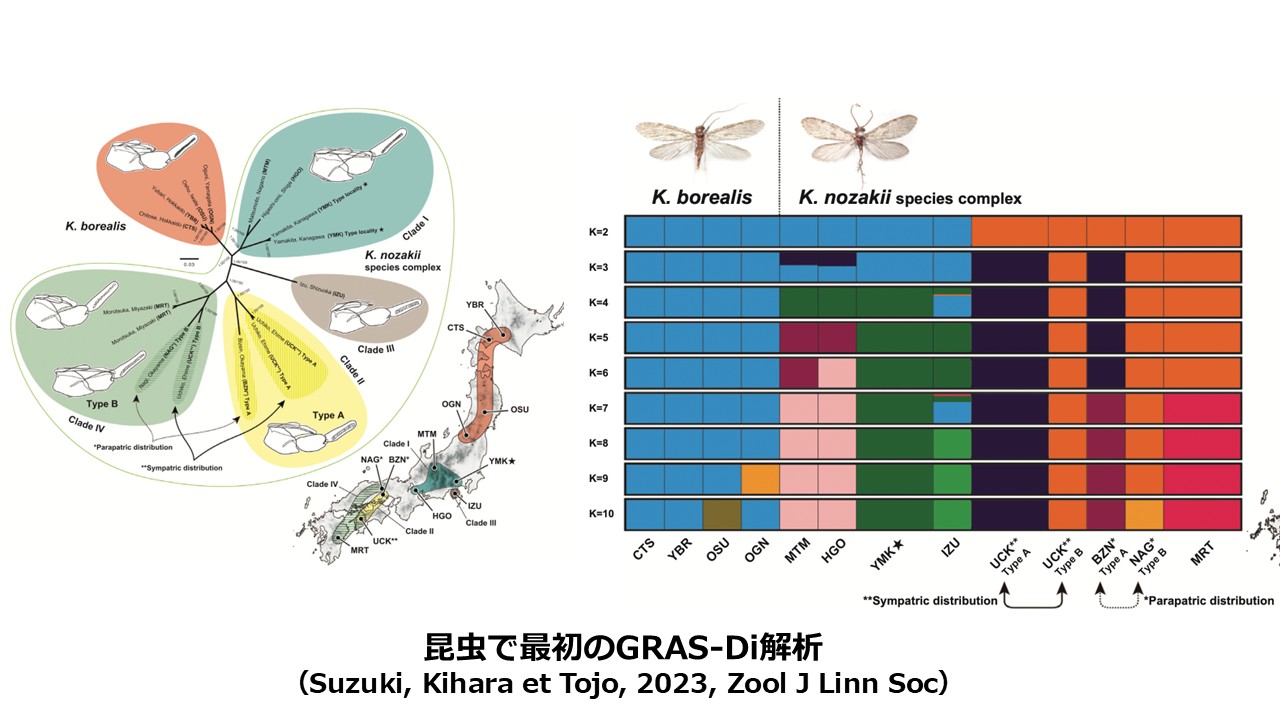
我々が水生昆虫のトビケラ類で最初に論文にしたのが2023年で、2019年にはコオイムシにおいても有効であることが分かっていました(Suzuki et al., 2019, 2023)。
最初に取り組んだマイクロサテライト・マーカー解析では、11遺伝子座位を対象とした解析が限界でしたが、この技術では数千程度という高感度の解析が可能になりました。
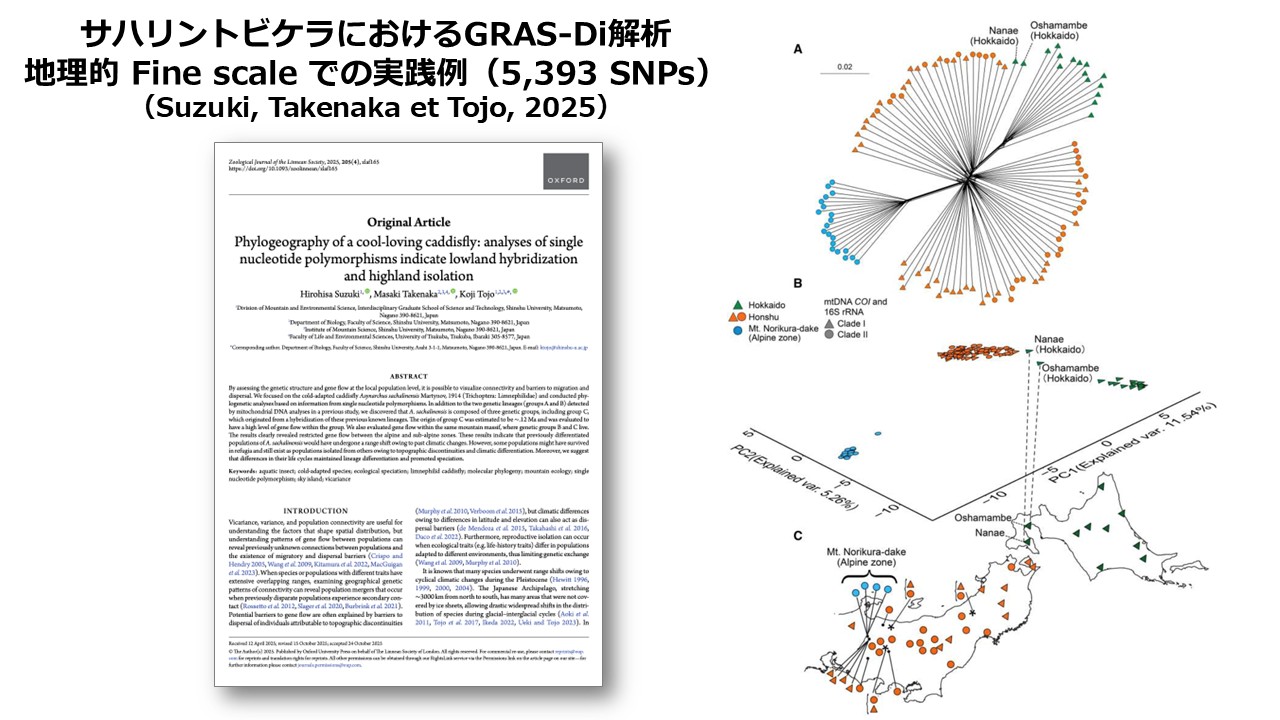
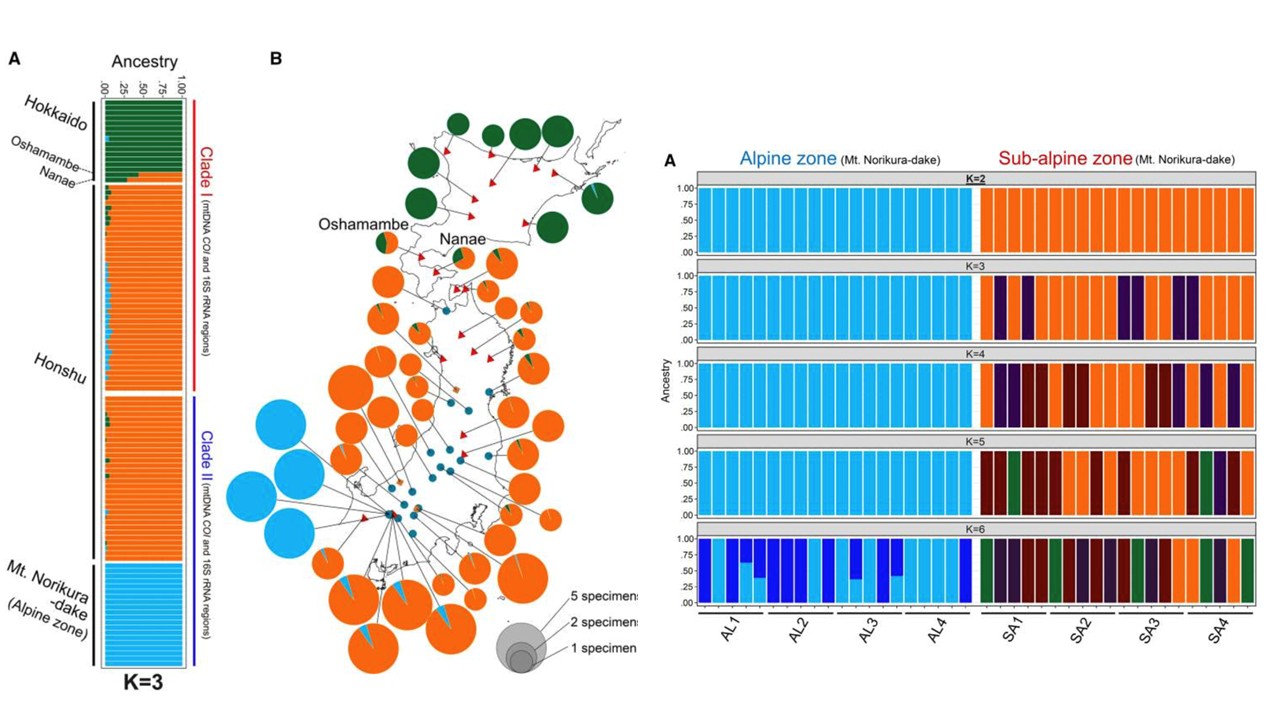
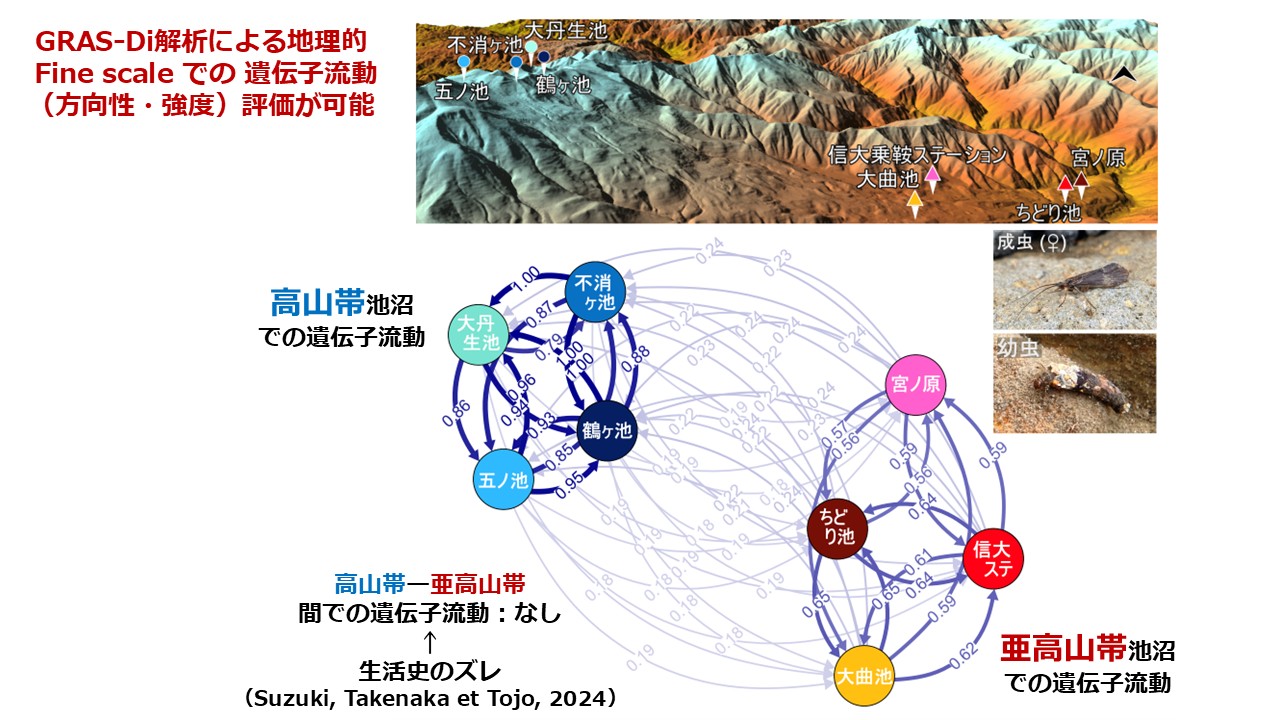
また、最近実施した別のトビケラ種におけるGRAS-Di解析の成果についても紹介します。サハリントビケラいう、高山帯・亜高山帯に生息するトビケラ種で、冷水環境に適応したトビケラです。乗鞍岳を中心に、本種の分布域広域を対象に解析したところ、5,900程度のSNPを用いることができ、その評価では、地理的に近い集団同士でも遺伝的にはほとんど混じり合ってないということが分かってきました。
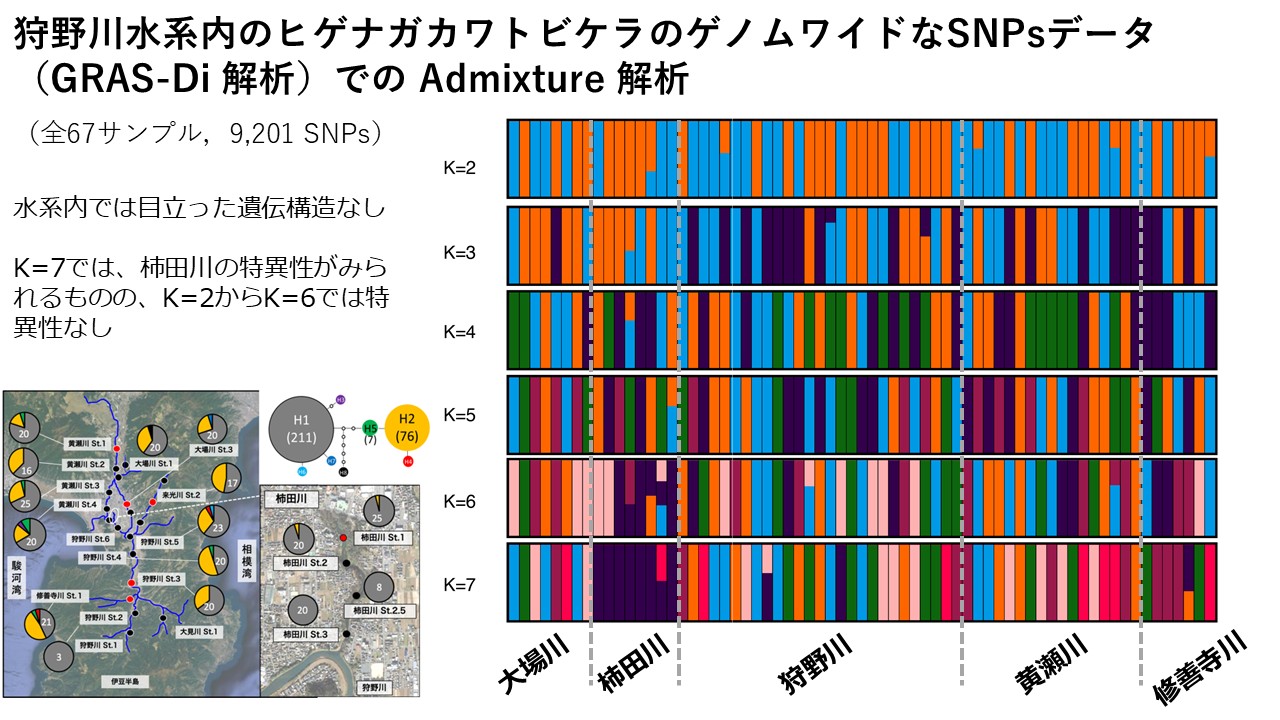
このように、GRAS-Di解析技術の有効性が示されたので、この手法を狩野川水系内のヒゲナガカワトビケラにも適用してみることにしました。
ヒゲナガカワトビケラでは、9,201座位を解析することができました。マイクロサテライトの11座位に比べて、2桁ほど高い高感度での議論が可能となったということです。
図の色の違いは遺伝子型の違いを表しており、いくつの遺伝グループに区分するべきかについては、グループ数を何段階かに仮定してグループ化した結果になります。これを見ると、2~6グループ区分では柿田川の特異性が見られず、7区分にした際に柿田川の特異性が示されました。解析は8, 9, 10と区分数を変えながら実施してゆきますが、区分次第では、柿田川の特異性が見えてきました。
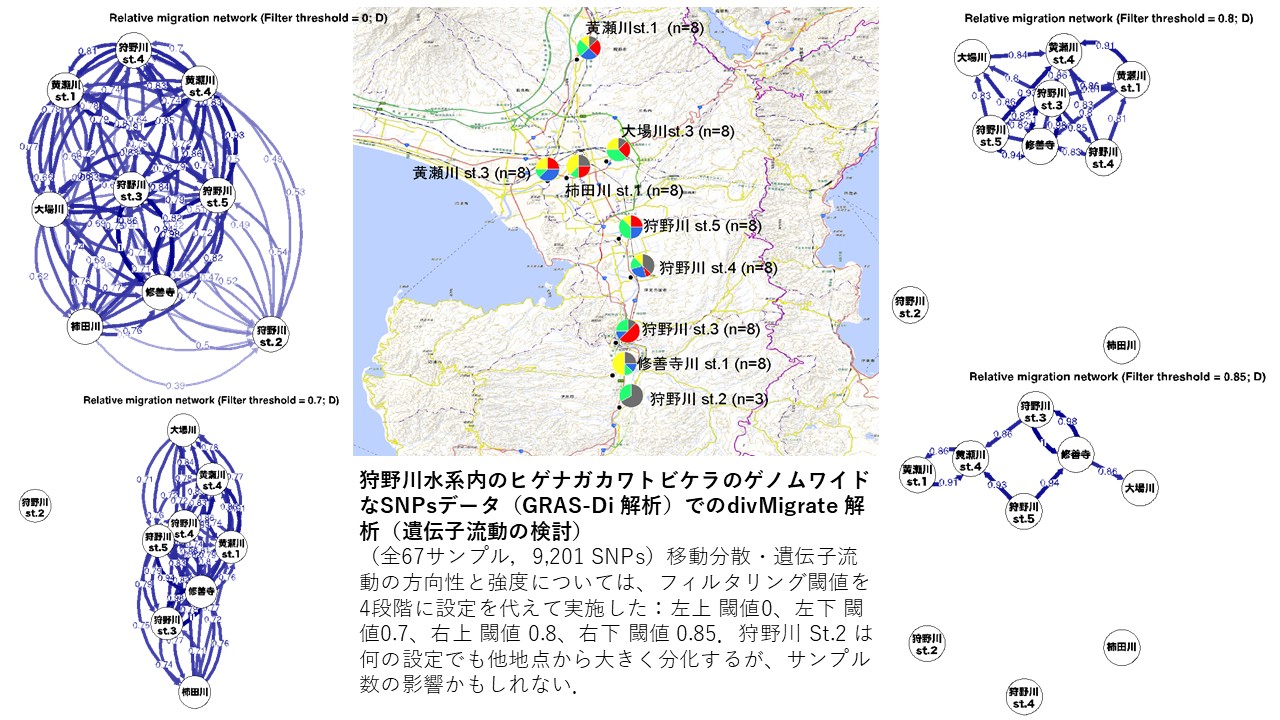
同じデータセットで、divMigrate解析を行いました。これは、集団の異なるヒゲナガカワトビケラが、どの程度、互いに行き来しているかについて、SNP解析の結果(遺伝情報)から解析する手法です。どの程度、厳しく評価するかで結果も変わります。
狩野川のステーション2は、狩野川上流域の天城に近いエリアで、ヒゲナガカワトビケラの密度が低く、たまたま採取された個体の遺伝子型の影響がどうしても強くなってしまいますが、評価基準を段階的に厳しく設定する中で、遺伝子流動のネットワークから外れていきました。そして、この地点の次に、ネットワークから外れたのが柿田川です。
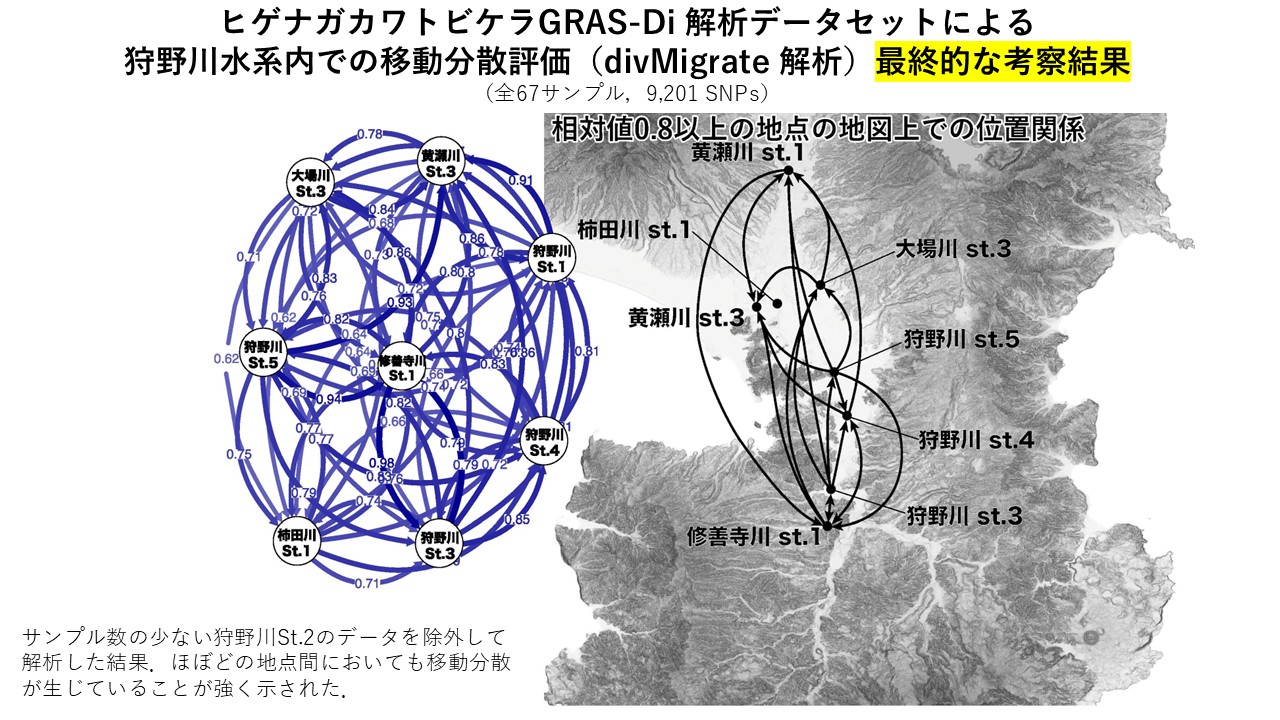
最も高く評価されたモデルを見ると、柿田川ステーション1もネットワークに含まれていますが、遺伝子流動に関する相対値が0.8以上の、より高いものだけに限定した上で、遺伝子流動の方向性を示す矢印を描くと、柿田川だけがどことも繋がらない結果となりました。
水系内の遺伝子流動には、柿田川も組み込まれてはいますが、その中で唯一独立性が高いという傾向が見えてきました。このように、GRAS-Di解析の有効性がわかりましたので、現在、ヒゲナガカワトビケラ以外の解析も進めているところです。
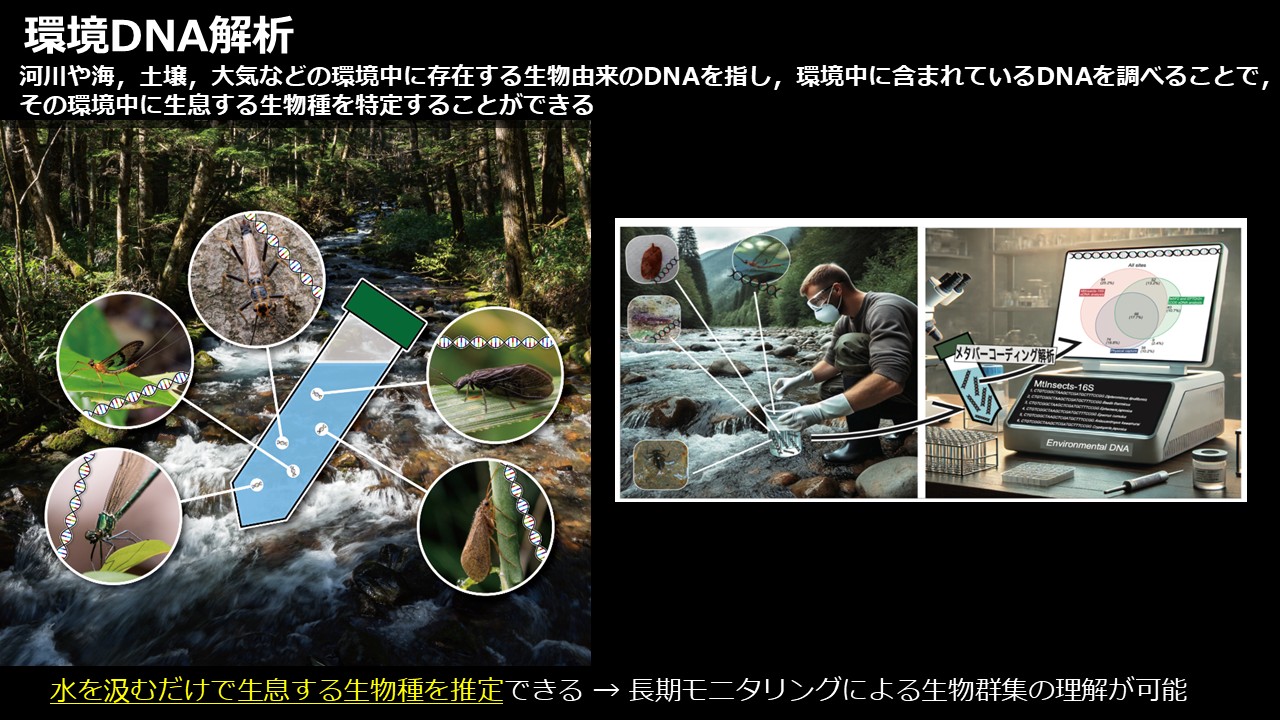
最後に環境DNAについて述べます。
狩野川が増水して放水路が開放された時、水生昆虫類や魚類がどの程度放水路を利用しているのか、あるいは放水路へと流されてしまっているのか、はとても気になるところです。とはいえ、放水路が開放されるような洪水時に調査サンプリングを実施することはできませんので、せめて採水して環境DNA解析ができないかと考え、河川事務所の協力を得て水を汲んでもらいました。しかし、洪水時の濁水を用いた環境DNA解析は難しく、良好な結果を得ることはできませんでした。最近、田んぼの水を利用した環境DNA解析などの手法も検討され、そのような研究事例も出はじめているので、またトライしたいと思っています。
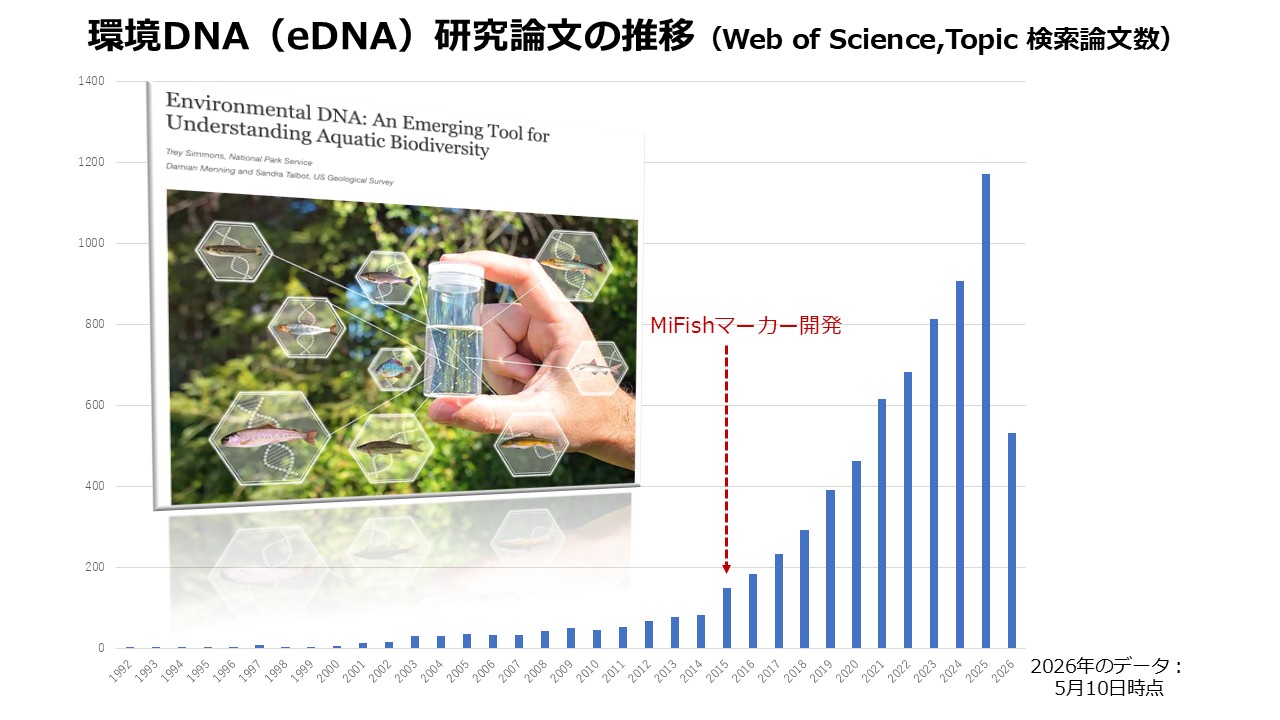
環境DNA研究の推移を把握するため、Web of Science による検索でヒットする国際誌上に掲載された論文件数をグラフ化してみました。
1992年に2本の論文が出て以降、しばらくは低調が続きましたが、2015年に魚類におけるメタバーコーディング・マーカー「MiFish」が開発されて以降、環境DNA研究は世界的に激増しています。日本はそのパイオニアです。
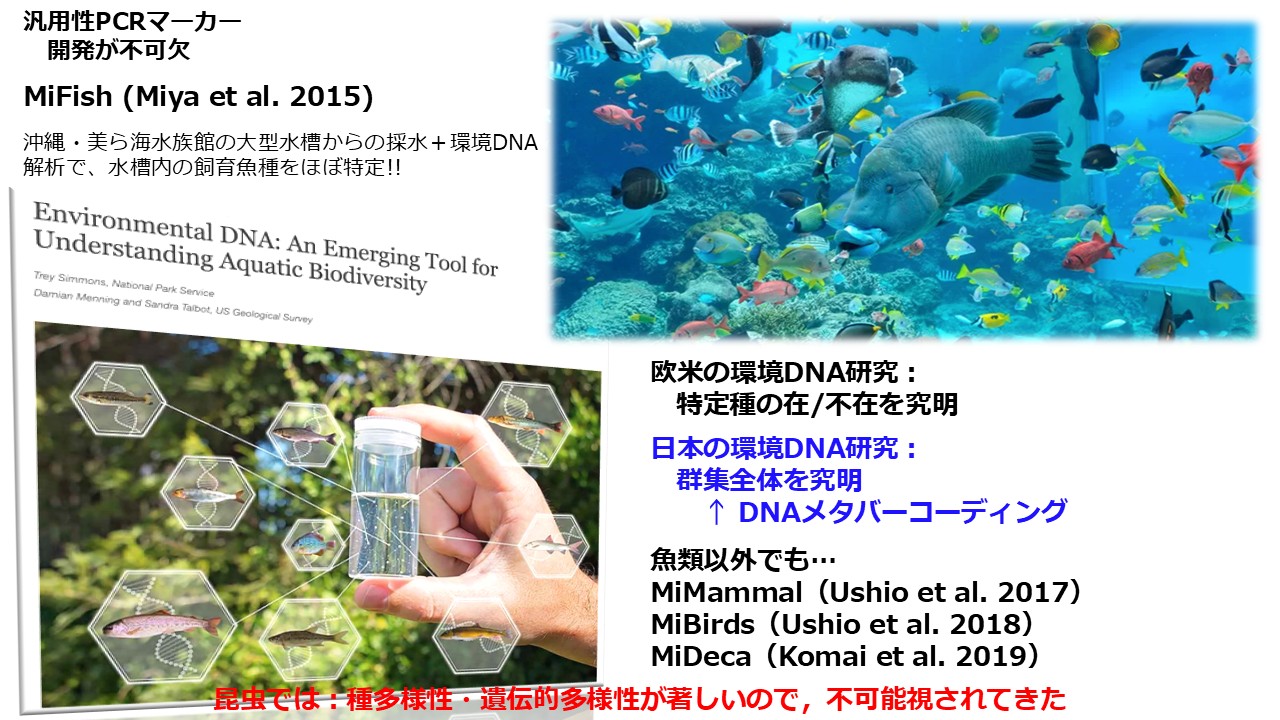
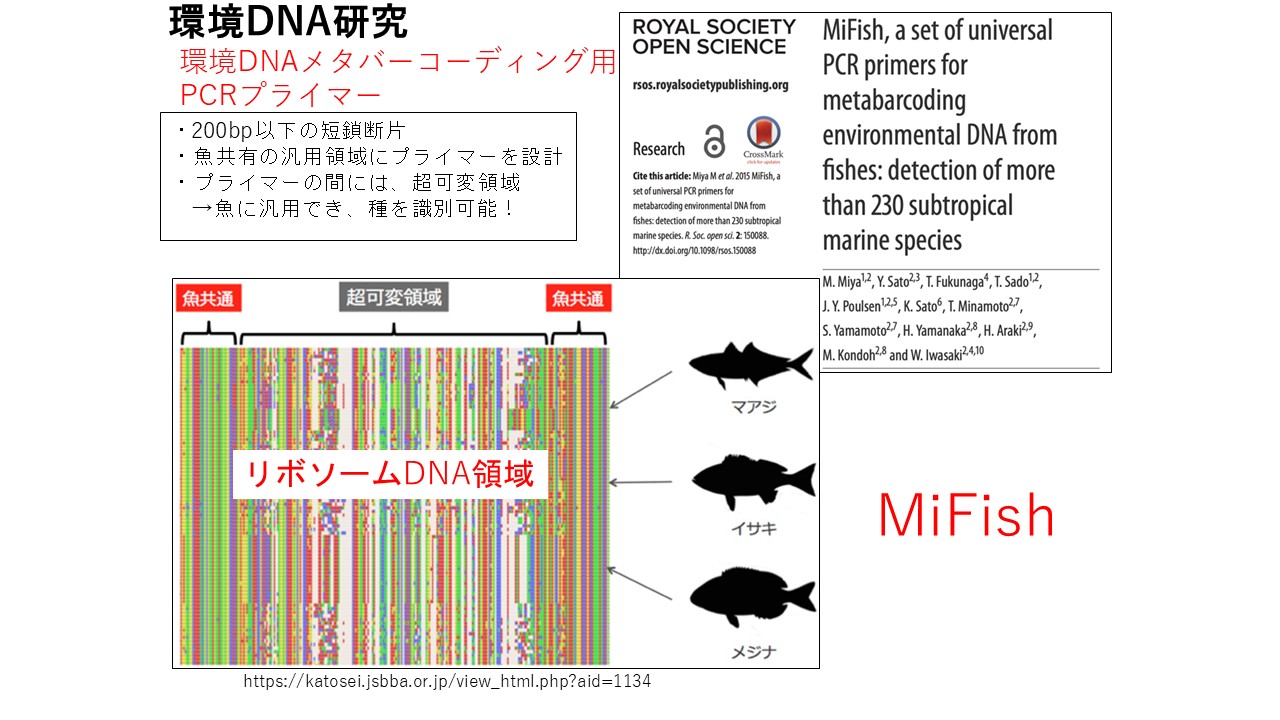
宮らの論文(Miya et al., 2015)は、美ら海水族館の大型水槽から採水し、水槽内の飼育魚種をかなりの制度で特定できた成果で、この研究が環境DNAによるメタゲノム解析の新たな可能性に火をつけたといえます。その後、魚類以外も哺乳類のMiMammal、鳥類のMiBirds、甲殻類のMiDecaなど、世界的に使われているメタゲノム解析用マーカー開発が続きますが、いずれも日本の研究者による成果です。
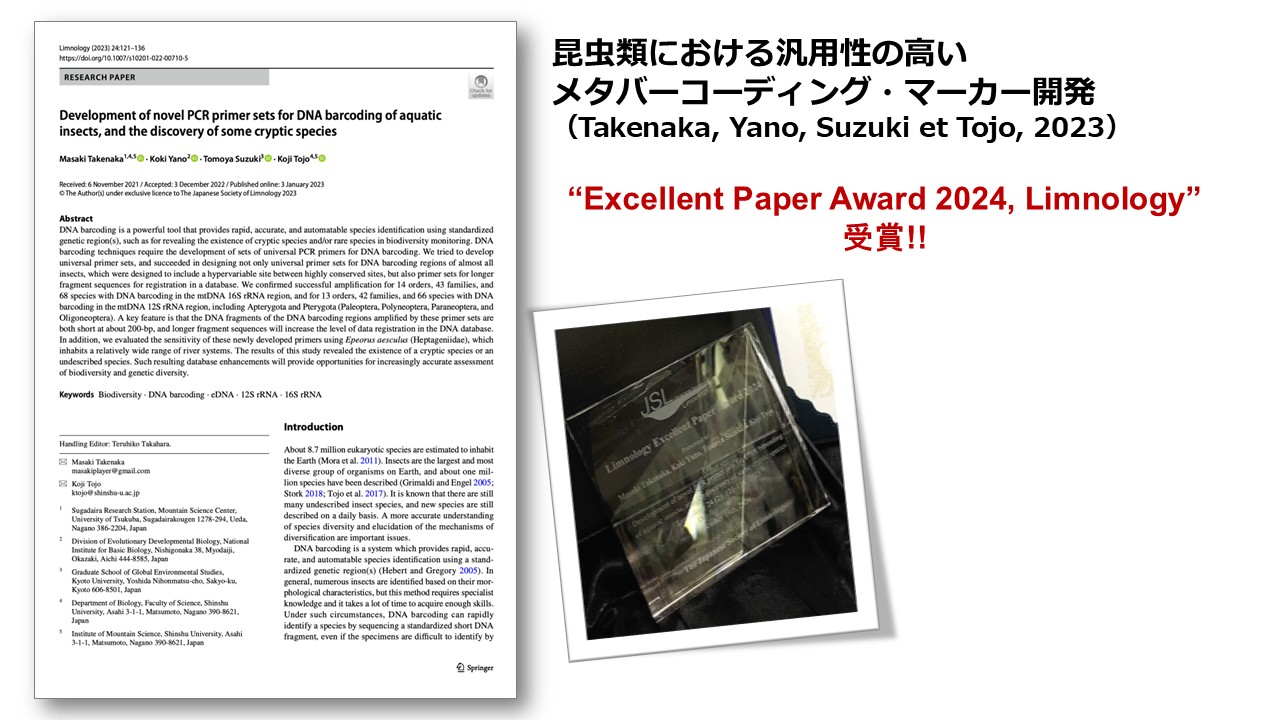
一方、昆虫類では、あまりにも種多様性が高いため、昆虫類に汎用できるようなメタゲノム解析は不可能視されてきました。海外の研究者らにより、いくつかの遺伝マーカーが提案されてきましたが、なかなか実用性は高まりませんでした。そうした中、我々は独自の遺伝マーカーを開発し、2023年に論文として発表しました(Takenaka et al., 2023)。
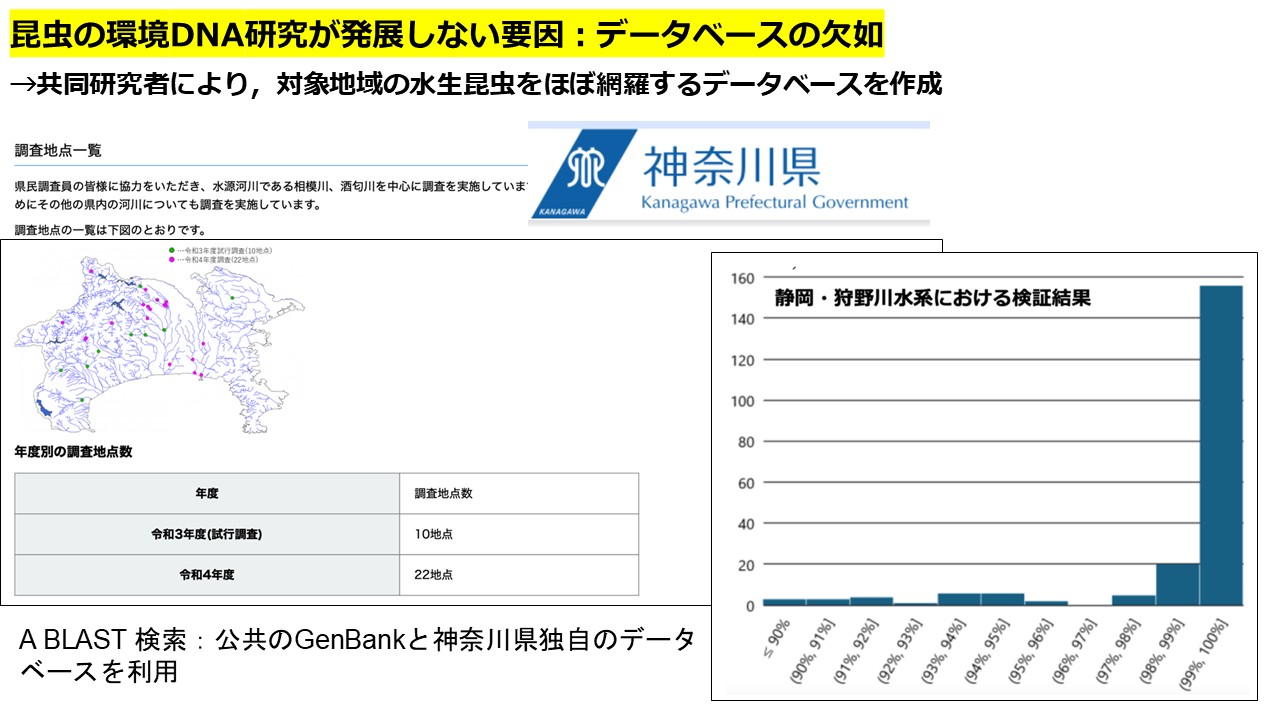
我々が新規開発したマーカーがどの程度使えるものであるのかを検証したいところですが、昆虫類では既知種の遺伝情報が漏れなくGenBankに登録されているわけではなく、環境DNAで検出された塩基配列が、どの種の配列と対応するのかを評価するためには、リファレンス(参照配列のデータベース登録)が不可欠です。ちょうど都合がよく、神奈川県環境研究センターでは、神奈川県内の水生昆虫種の遺伝子配列を網羅的に解析し、データベース化を進めていましたので、神奈川県との連携により、我々が開発したメタゲノムマーカーの効果を検証してみました。その結果は、以前の研究に比べて飛躍的に良好な成果でした(Takenaka et al., 2024)。詳しくは後で触れますが、少なくとも参照データが充実した神奈川県内やその周辺地域では、かなり有効であると言えます。隣接県である静岡・狩野川水系であれば、ほぼ問題なく高い精度で利用できるものと思います。
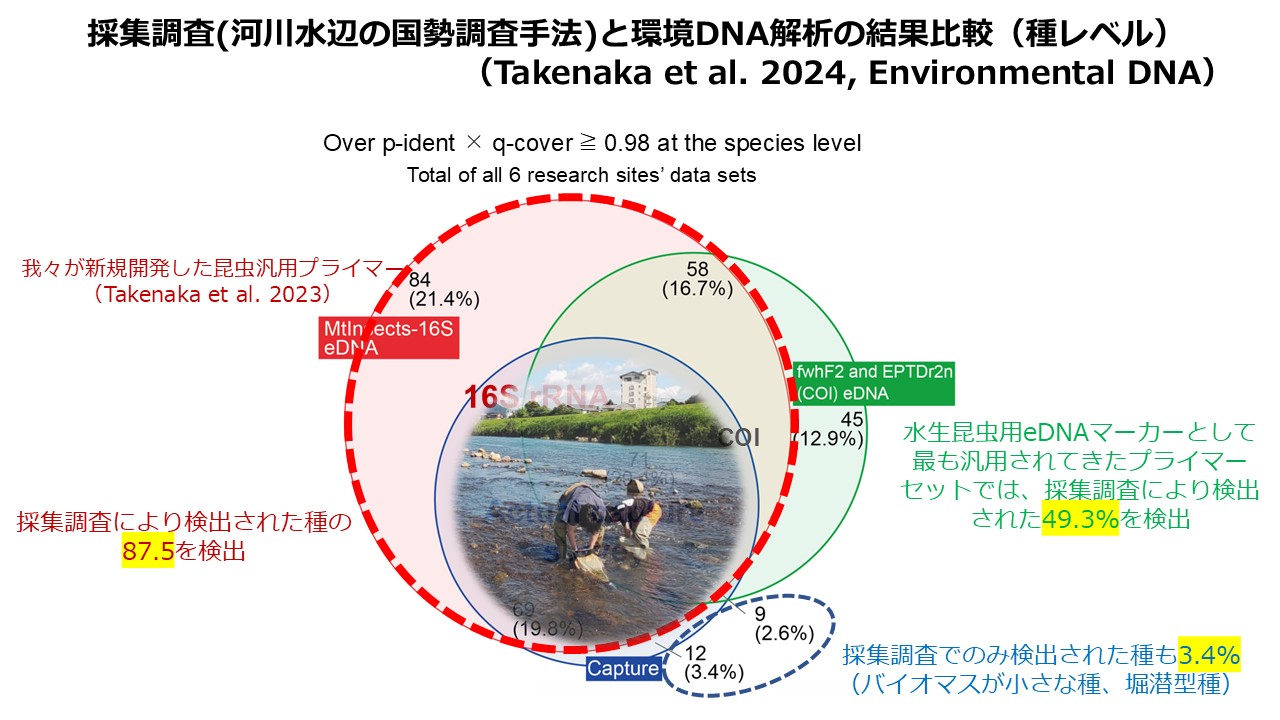
こちらが論文に掲載した図を載せたものです。神奈川県内の相模川水系と酒匂川水系で、河川水辺の国勢調査におけるサンプリング手法によって検出できた種(青色円)と、環境DNA解析の成果を比較しました。
イギリスの研究グループが開発した以前の昆虫用メタゲノム解析用マーカーで検出された種が緑色円です。種数はやや多く検出されましたが、採集調査とは重ならない部分も結構みられます。
一方、我々が開発したマーカーで検出された種を赤色円で示しますが、実際の捕獲により検出された種をほぼ含む結果でした。一部、環境DNA解析で検出されなかった種については、生息密度が低い種であったり、河床下に潜るような生活型の種でした(DNAが砂礫内に留まり、採水では捕捉できなかった可能性が考えられます)。採水前に、河床の礫をかき回すような工夫により改善が可能かもしれません。
以前は苦労してサンプリングを行い、その後、砂礫まじりのサンプルから水生昆虫標本をソーティングした上で、顕微鏡を用いて種同定する、という大きな労力を伴う作業が不可欠でしたが、たかだか500ml採水して濾過するだけといった現場では簡易な操作により、高い成果が得られることは、とても魅力的な技術革新と言えます。
もちろん、実際の採集を伴う調査との併用が重要であり、互いのメリットでデメリットを補完することが重要ですが、現地調査サンプリングが困難な洪水時の評価などでは、特に環境DNA解析の威力が発揮されやすいと思われますので、さらなる技術革新が期待されます。
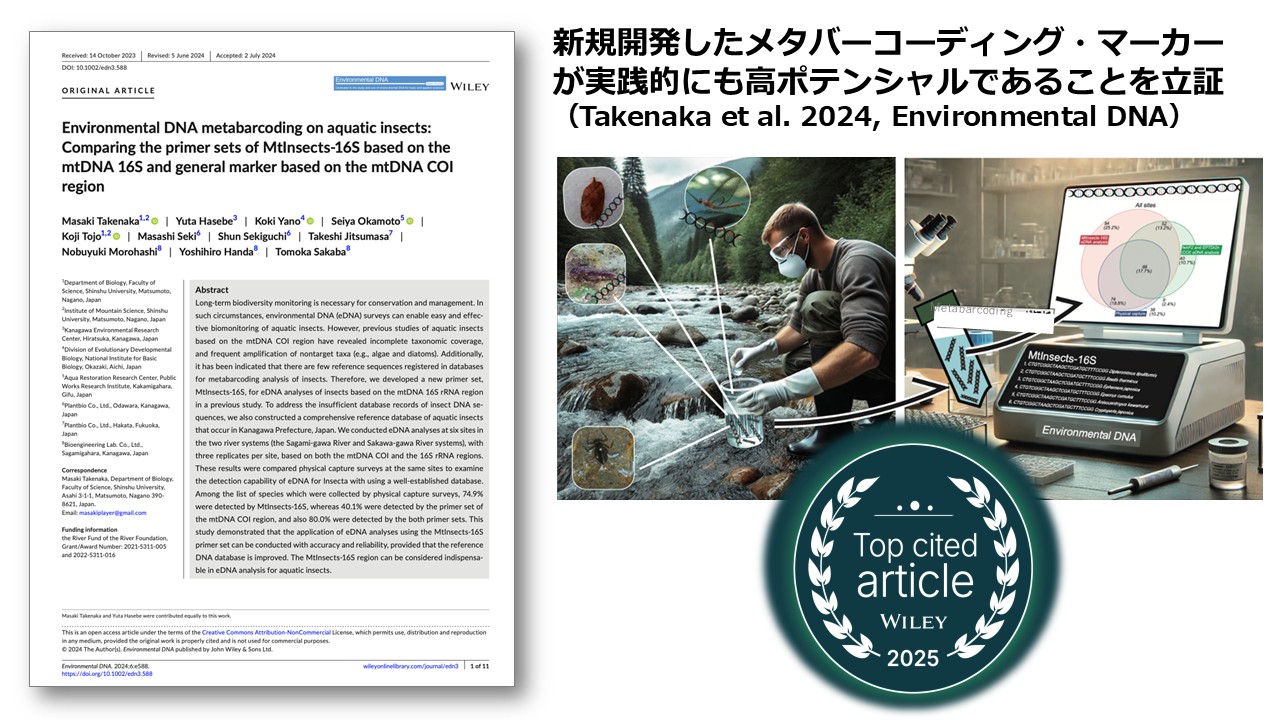
こうした内容の論文を2024年に環境DNAの学会誌「Environmental DNA」に報告したところ、世界的にも注目されたようで、2025年に「Environmental DNA」に発表された論文の中で一番引用されたということで、先日、出版社からの表彰をうけました。
また、このマーカーは水生昆虫だけでなく昆虫全般にも適用できます。例えば、昆虫種の多様性が高い熱帯地域で、スコールの後に樹木の幹を伝って流れ下る水を採取することで、当該樹木を棲み場所として利用する昆虫種を検出するといった、当初、我々が想定していなかったような研究にも使われ始めているようです。
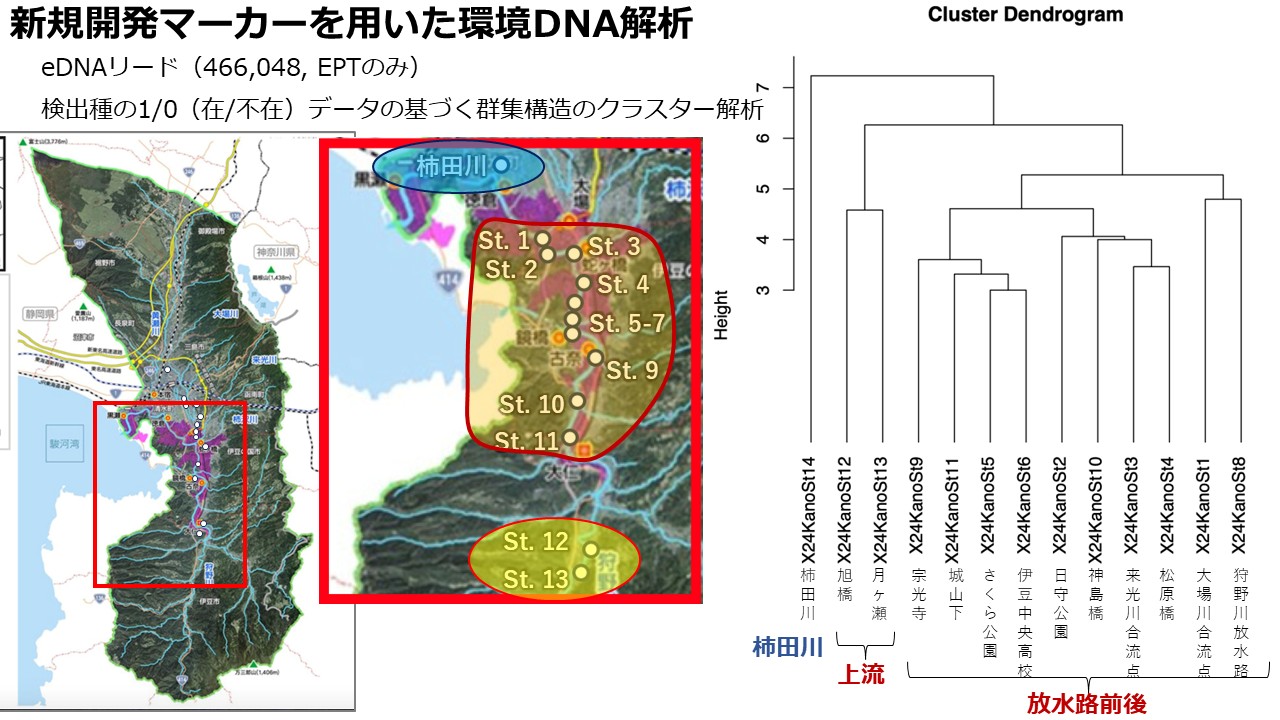
最後に、こうした環境DNAを用いた解析について、狩野川水系での事例を紹介します。通常時に採水した環境DNAの解析結果について、カゲロウ目、カワゲラ目、トビケラ目(いわゆるEPT)だけに限った解析ですが、膨大なデータが得られました。
得られたDNA配列を基に、群集構造をクラスター解析すると、狩野川放水路の周辺と上流の地点では、きれいに群集構造が分かれ、柿田川はさらに分かれる結果となりました。柿田川の群集構造の特異性が表れています。
前半に紹介したようなヒゲナガカワトビケラの事例のように、特定種をターゲットにしたゲノムワイドな解析から、遺伝子流動の方向性や強度を把握するようなできるようになってきました。また、環境DNA解析なども効果的に組み合わせることで、対象種を拡大しながら、多角的な評価が可能となってきましたので、さらに色々と取り組んでゆきたいと考えています。
(質疑応答)
【竹門】遺伝的解析により柿田川の個体群・群集の特異性が明らかになった点は非常に興味深い。その特異性が一体何に依
存しているのか、また、どのような要因が特異性を発揮させているのか。
【東城】ヒゲナガカワトビケラもそうですが、柿田川は狩野川本川と水温が大きく異なるため、繁殖時期が重ならない期間
が多く存在します。その時期は、柿田川だけで繁殖が行われることになります。繁殖時期の異なる集団が柿田川に
存在することは、例えば狩野川が洪水で大ダメージを受けた際にはリザーバー的な機能を発揮することが考えられ
ますので、今後この視点でも研究を深めたいと考えています。
【竹門】私は1977年に初めて柿田川で水生昆虫を調査しましたが、ミシマバイカモに丸々と太ったヒゲナガカワトビケラが
多数生息していました。
当時は下水が柿田川に流入しており、人為的な有機物が餌になっていた可能性があります。
また、底質には石炭殻が大量にあり、崖の上から生ゴミや残土が直接投棄されているような状況でした。
1977年当時と現在とでは、群集構造、栄養起源、土砂の生産由来などが随分と異なっていたのではないかと推察さ
れます。
【谷田】環境DNAのデータベースについて伺います。神奈川県の事例では、データベースに登録されている種のみが対象と
なっているのでしょうか。未登録の種の扱いはどうなっていますか。
【東城】神奈川県のデータベースは非常に充実しており、検出されたDNAは、質の悪いものを除けば、ほぼ、どれかに当て
はまります。双翅目昆虫では難しいところがありますが、カゲロウ目、カワゲラ目、トビケラ目は概ね同定可能で
はないかと思います。
【谷田】レファレンスデータベース自体の信頼性も課題です。登録者が分類の専門家でない場合、誤った種名が登録されて
いるケースも散見されます。信頼性とカバレッジを高める作業は地味ですが、今後の本質的な課題でしょう。
【東城】公共データベースをそのまま使う場合と、信頼できる自分たちのオリジナルデータを使う場合を比較したところ、
それほど大きな差は見られませんでした。
ただし、信頼性の高いリファレンスをどう構築していくかは、大きなテーマのひとつだと思います。 |



 第40回柿田川生態系研究会(2026年5月13日)
 水生昆虫で見た柿田川
